纯化复合体这里,只有在同源PopP2存在时,εNAD+水解才增强;BN-PAGE上的位置没变(Fig.1)。这说明激活离不开NADase活性,并非靠复合体变大。
TIR域比对也给了线索:152个拟南芥TIR域里,sensor常缺催化谷氨酸或BB-loop天冬氨酸,executor则保留(Fig.3E、SI Fig.S4)。这提示RRS1-R的TIR域没有NADase活性。
研究者的路子是拿RRS1-R/RPS4蛋白复合体做切入点,把生化活性和复合体状态放在一块儿比。具体做法是在异源表达系统和转基因植株中纯化该复合体,分别在有无AvrRps4、PopP2等效应子时测定NADase活性;复合体迁移与寡聚状态则用BN-PAGE和免疫沉淀来比较。另一条线借助催化残基、BB-loop等突变,以及TIR结构域的序列与结构比较,去检验效应子依赖激活和RRS1-R TIR域催化能力缺失之间是什么关系。
生信多组学入门与AI

Figure 1
先要确认这个复合物确实能响应效应物,后面的寡聚分析和突变分析才有落脚点。
做法是N. benthamiana eds1瞬时表达、anti-Flag纯化,再跑εNAD+荧光时间曲线;三个技术重复。
Figure 2:想回答“激活时复合物会不会变大”,于是把RRS1-R/RPS4在加或不加AvrRps4、PopP2时跑蓝白胶;结果无论有没有效应物,复合物都停在差不多的位置,拟南芥转基因材料里也一样。说明激活不是靠拼成更大的寡聚体,而更像复合物内部重新摆位,把酶活口袋露出来。
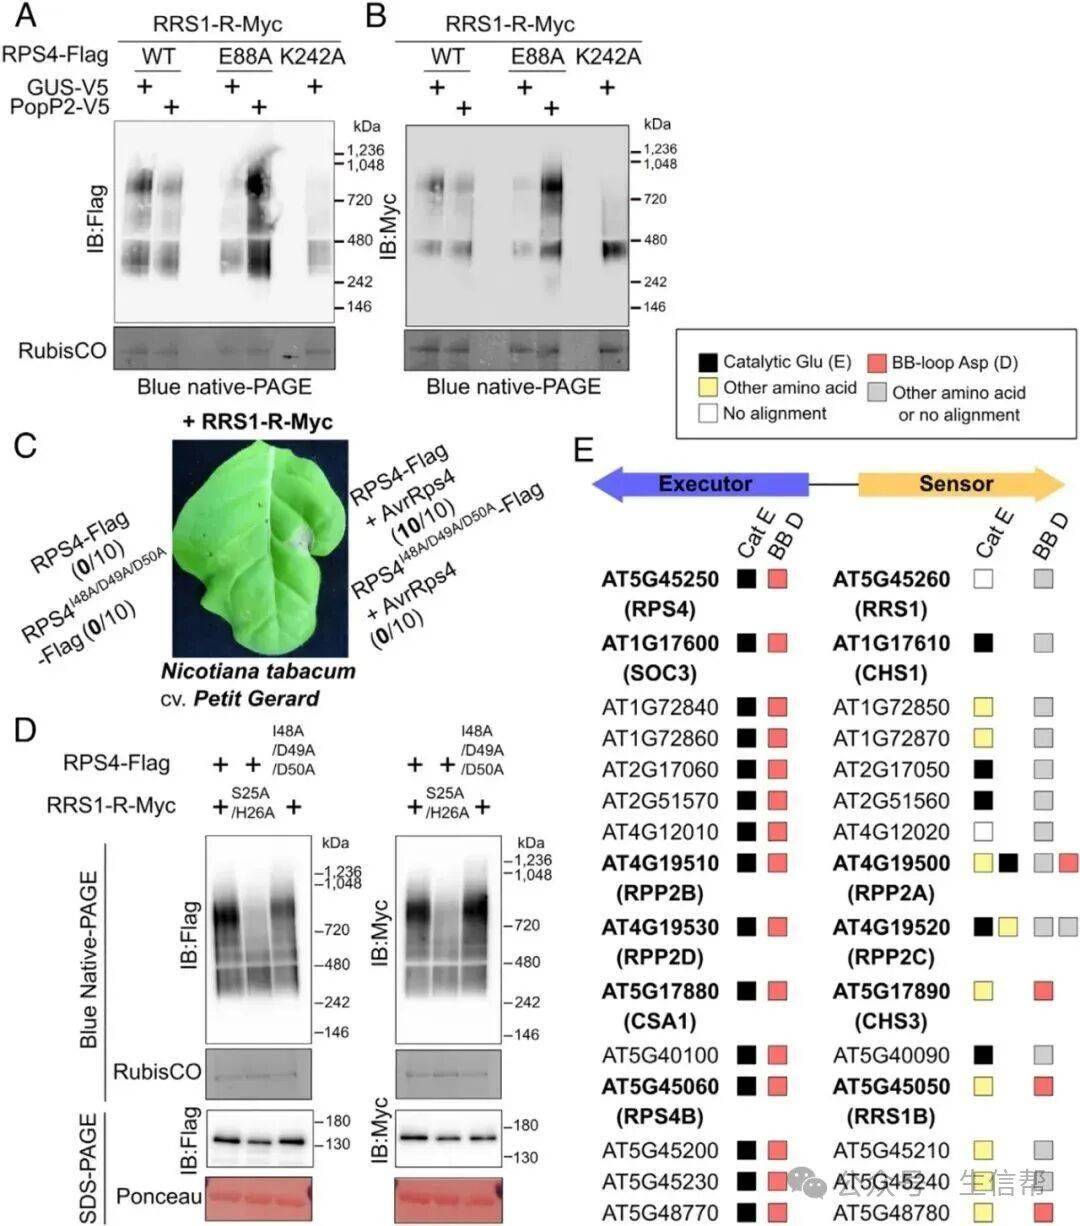
Figure 2
这步背后的逻辑,是把“激活=变大”这个简单解释先排除掉,给构象重排模型铺路。
实验细节上,用了BN-PAGE加SDS-PAGE免疫印迹,材料包括烟草eds1瞬时表达和拟南芥转基因系。
大小没怎么变,活性却变了;这图真正推到台前的是“重排”,“加人”那套解释被挤到后面。
Figure 3:想回答“哪些结构元件管组装、哪些管功能”,于是用一系列突变拆RRS1-R/RPS4:RPS4催化谷氨酸E88A不影响寡聚却丢HR,P-loop K242A直接丢寡聚;RRS1-R的AE界面突变削弱复合物;RPS4 BB-loop突变不破坏寡聚但HR没了。再加上拟南芥TIR域比对,传感器NLR常缺催化残基。说明寡聚和酶活是两件事,AE界面管组装,催化与BB-loop管激活。
这一块其实是在把结构域突变和功能表型对上,分清哪些突变只是“能抱团”,哪些才关系到“能发信号”。
做法上没绕开:BN-PAGE/SDS-PAGE、烟草HR assay,另配152个拟南芥Col-0 TIR域的AlphaFold2比对和系统发育。
这图最硬的一点,还是把“寡聚”和“NADase/HR”拆开来看了。
这为什么重要?生化、遗传和结构预测被收束成一个可检验的激活模型。
数据怎么来的:用AlphaFold3 multimer预测TIR域组装,再拿本文突变表型做总结示意。
#多组学
评论 (0)
登录后参与评论